Virología
Rotavirus: control y vacunas
Inmunidad inducida por rotavirus
Los rotavirus producen
una infección local que afecta principalmente las células maduras
de las vellosidades intestinales. El período de incubación (1-3
días) es relativamente corto por lo que induce una inmunidad parcial
y poco duradera 80. Este tipo de infección es similar a
producida por los virus respiratorios y contrasta con la inmunidad producida
por los virus sistémicos, como el polio, rubéola, varicela y
sarampión, que tienen un período de incubación más
largo (7-14 días), y producen una inmunidad que dura toda la vida 80.
La inmunidad de la mucosa constituye una defensa muy importante en las infecciones
intestinales producida por el rotavirus 81-84.
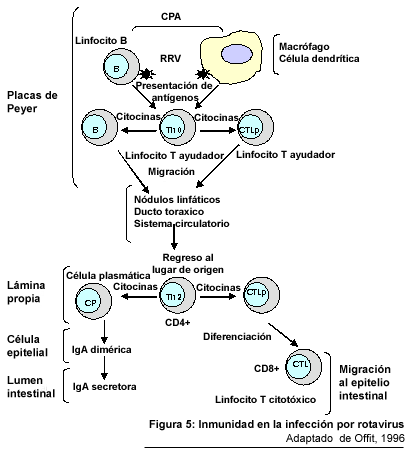
La infección
comienza con la unión de los rotavirus a receptores específicos
en las células epiteliales. Luego los virus se replican y hacen contacto
con las células M que los transportan a las Placas de Peyer donde son
presentados por los macrófagos, las células B y otras células
presentadoras de antígenos (células dendríticas) a las
células vírgenes (Th0). Después de haber sido activadas
estas células (Th2), ellas inician la expansión clonal de las
células B virus específicas y de las células precursoras
de los linfocitos T citotóxicos (LTCp) 80. Las células
B virus específicas y las LCTp penetran los nódulos linfáticos,
llegan al sistema circulatorio vía el ducto toráxico para luego
regresar al lugar de origen donde fueron estimulados o a sitios asociados a
respuesta efectora en la lámina propia del intestino. Se sabe que este
regreso a lámina propia es selectivo y mediado por receptores en los
linfocitos T (integrinas) y en células endoteliales (glicoproteína)
85. En esta zona, tanto la secreción de IgA por las células
B diferenciadas (células plasmáticas) como la diferenciación
de las LCTp en linfocitos T citotóxicos CD8* efectores son inducidas
por citocinas 80. Las citocinas que inducen la secreción de
IgA específica por las células plasmáticas son las interleucinas
(IL-4,IL-5 y IL-6). La diferenciación de las células B virus específicas
en células IgA secretoras (IgA-s) es un proceso que toma de 3-5 días
después del período de incubación 81. La IgA
dimérica se ubica en la superficie basolateral de la vellosidad, adquiere
la fracción secretora en el citoplasma y es excretada al lumen intestinal.
El mecanismo por el cual la IgA elimina al virus es mediante su unión
con el antígeno (interferencia conformacional) bloqueando la unión
del virus a los receptores celulares y, por ende, su entrada a la célula.
También se ha postulado que la IgA puede actuar intracelularmente 86.
El interferon y la interleucina IL-2 son las citocinas que promueven la maduración
de los CTLp a CTL efectores. La CTL específicas y efectoras residen en
la vellosidad intestinal mientras que las células B específicas
y las CTLp permanecen en la lámina propia. Así que, mientras las
Placas de Peyer son el principal lugar para la inducción de la respuesta
inmune, la lámina propia es el principal lugar para la maduración
de las células específicas transformándose en efectoras.
La desventaja
de la inmunidad de mucosa es su corta duración, pero se compensa con
una rápida respuesta anamnésica en contactos posteriores -re-exposición-
con el antígeno. Cuando este sistema no es estimulado, los anticuerpos
disminuyen con el tiempo y su acción protectora mengua de 6 a 12 meses
posteriores al contacto viral. Otra desventaja es la posibilidad de presentar
dificultades en la respuesta a los antígenos administrados por la vía
parenteral. Pero, en el caso de los rotavirus, los estudios hasta el momento
indican la producción de una adecuada respuesta sérica a la inmunización
parenteral en animales 87,88.
Infección natural y protección clínica
El papel protector de la inmunidad inducida durante la infección natural
por rotavirus ha sido demostrado ampliamente en varios estudios, que constituyen
las bases para el desarrollo de vacunas contra este agente viral. El primer
estudio fue llevado a cabo por la Dra. Bishop en Australia 89,
en el cual se demuestra que neonatos infectados con rotavirus durante el primer
mes de la vida -seguidos por 3 años- son protegidos contra la enfermedad
severa, aunque no así contra re-infecciones; mientras que los neonatos
no infectados sufrieron diarreas severas por rotavirus en una significativa
mayor proporción que los neonatos infectados. Estudios posteriores, realizados
en neonatos en la India 90 y, en niños lactantes, también
confirmaron que la infección primaria protege contra la diarrea severa
en contactos posteriores con el virus 91,92. Posteriormente, un estudio
de la historia natural de la infección por rotavirus -el primero de su
tipo-, realizado con 200 niños mexicanos, seguidos por 2 años,
confirmó estas observaciones 40. Este estudio mostró
que después de la primera infección natural, independientemente
de la severidad, el 88% de los niños quedaron protegidos contra las diarreas
severas, 75% fueron protegidos contra las diarreas de cualquier severidad y
40% de los niños quedaron protegidos contra subsecuentes infecciones.
Con el aumento del número de infecciones -dos, tres o cuatro- se incrementa
el grado de protección, pero se necesitan al menos dos infecciones, sintomáticas
o asintomáticas, para prevenir la enfermedad por rotavirus de cualquier
severidad 40. Es decir que la infección natural no protege
contra re-infecciones pero disminuye significativamente la severidad de la enfermedad.
Estos resultados fueron también corroborados en un estudio realizado
en Africa, donde se mostró que la infección primaria confiere
70% de protección clínica 39. La epidemiología
de la enfermedad por rotavirus, que muestra que ellos son causa importante de
enfermedad en los primeros años de la vida, confirma estos hallazgos.
Varios estudios muestran que la primera infección ocurre en los primeros
dos años de vida y está generalmente asociada a diarrea severa,
mientras que las re-infecciones se presentan en edades posteriores, durante
toda la vida, y son leves o asintomáticas 20,33,37. Estudios
en Venezuela muestran que la severidad de la diarrea por rotavirus disminuye
con la edad 4,14. Igualmente, se han descrito diarreas recurrentes
causadas por el mismo o diferente serotipo de rotavirus 93-95, sin
embargo, el segundo o tercer episodio de diarrea presenta una clínica
muy leve, en la mayoría de las ocasiones 95. Estos resultados
tienen importantes implicaciones en el desarrollo de una vacuna para rotavirus,
ya que la vacuna tendría impacto, fundamentalmente, en la mortalidad
y en la enfermedad severa emulando la infección natural 80,81.
Inmunidad mediada por anticuerpos y protección
La infección por rotavirus induce inmunidad mediada por anticuerpos específicos
IgM, IgG e IgA que pueden ser detectados de los 7 a 28 días post-infección
en suero, saliva, contenido duodenal y heces 20,96-99. De esta manera,
los virus que infectan las mucosas, como los rotavirus y virus respiratorios,
inducen una respuesta local tipo IgA secretora (IgA-s), factor primordial en
la defensa de la mucosa intestinal o vías respiratorias, según
el caso. Por otro lado, las proteínas de la capa externa, VP4 y VP7,
inducen anticuerpos neutralizantes (IgG) 66,100, y la proteína VP6, ubicada
en la capa intermedia, así como la proteína no estructural NSP4,
son también inmunogénicas 101,102.
En general,
anticuerpos neutralizantes (IgG) homotípicos a la VP7, y en menor proporción
a la VP4, aparecen después de la primera infección 38,103-106.
En cambio, la re-infección estimula la aparición de anticuerpos
heterotípicos contra la VP7 y VP4 38,41,80,103. Lo que quiere
decir que la inmunidad producida durante el primer contacto con el virus es
principalmente homotípica y la respuesta inmune heterotípica aparece
con la edad como resultado de posteriores exposiciones al virus, tanto en niños
infectados en forma natural como en niños vacunados 38,104,105,107,108.
Estos resultados apuntalan o sostienen la necesidad de sufrir, al menos, 2 infecciones
para producir una respuesta inmune de amplio espectro, lo que implicaría
la necesidad de administrar 2 dosis de la vacuna.
En la actualidad,
la relación entre inmunidad mediada por anticuerpos y protección
es motivo de controversia y su definición es crítica para el desarrollo
de una vacuna. La correlación entre protección e IgA-s específica
en el intestino (S-IgA) ha sido demostrada 81-83,97. Sin embargo,
su presencia en el intestino es de corta duración - menor de 1 año
– 82,83,96, lo que explicaría la aparición de
episodios recurrentes 82,84,109. Se ha postulado que la IgA en suero
y en heces podrían ser buenos predictores de la S-IgA secretora 96-98
y, en consecuencia, buenos marcadores para los estudios de vacuna. En la infección
natural por rotavirus, se ha demostrado que la protección clínica
es mediada por IgA específica en suero 105,110-112 y en heces
82,83, aunque se ha reportado que la IgA en heces podría ser mejor
predictor de respuesta inmune de tipo protector que la sérica 113.
Sin embargo, no se ha demostrado el papel protector de la IgA sérica
en niños vacunados 112,114-116 y en heces no ha sido evaluada.
En este sentido, es de alta prioridad dirigir las investigaciones para encontrar
mejores marcadores inmunológicos en la inmunización activa 117.
Sin embargo, hasta ahora, la respuesta IgA sérica es el ensayo estándar,
requerido por los organismos internacionales, para predecir protección,
en los ensayos de campo con la vacuna de rotavirus.
El papel
protector de los anticuerpos neutralizantes serotipo específicos en suero
tampoco está completamente definido. Hay trabajos que reportan una asociación
entre protección y títulos pre-existentes homotípicos en
suero anti-VP7 38,105-106, pero otros estudios no muestran esta correlación
118, así como tampoco estudios con niños vacunados 119,120;
más bien, se ha demostrado protección heterotípica contra
infecciones por rotavirus humanos, en niños vacunados con cepas animales
- bovinas- que no comparten el serotipo con las cepas humanas 64,119,121,122.
La baja
frecuencia de rotavirus asociado a diarrea severa en niños de 0 a 2 meses
de edad 9,37,39 confirma que los anticuerpos de origen materno, tipo
IgG neutralizantes homotípicos o anticuerpos presentes en la leche materna,
confieren protección clínica 38,123,124. Estudios en
animales también confirman la protección clínica conferida
por la inmunidad pasiva de origen materno 125. También, se
ha observado que la administración oral de anticuerpos específicos
antirotavirus a niños inmunosuprimidos e inmunocompetentes produce una
recuperación más pronta al compararlos con niños no tratados
11,41.
En síntesis,
hasta el momento, no existen acuerdos definitivos sobre la correlación
entre inmunidad mediada por anticuerpos y protección, aunque las diferencias
metodológicas y la variabilidad en el tipo de muestra, utilizada en la
mayoría de los trabajos, podrían explicar la diversidad de resultados
126. Adicionalmente, la información obtenida hasta el momento,
muestra cierta utilidad - además es la única disponible de fácil
uso- de la inmunidad por anticuerpos para predecir eficacia en la infección
natural, pero se necesitan estudios adicionales que definan mejor el papel protector
de los anticuerpos en la inmunización. Además, pareciera, que
la presencia de anticuerpos específicos, en el intestino y en cantidad
suficiente - sean estos IgA, IgG o neutralizantes-, es crítica para que
se produzca el efecto protector 126.
Los resultados
contradictorios, en los niños vacunados, complican el logro de marcadores
inmunológicos adecuados para predecir el grado de protección,
aunque pudieran ser explicados en parte, por el limitado conocimiento de la
inmunidad inducida por cepas animales o virus rearreglados, en la inmunización
en humanos 126. También, se ha sugerido la posibilidad de
utilizar la cuantificación de las células secretoras de anticuerpos
circulantes (CSAs), que son un reflejo de la inmunidad intestinal, o de células
de memoria, rotavirus específicas T y B en suero, como marcadores que
puedan predecir la potencia y eficacia de una vacuna 117.
Inmunidad
mediada por células y protección
Ambos componentes de la inmunidad, la mediada por anticuerpos y la mediada por
células, cumplen una función en la protección clínica
del rotavirus 80,124,127. Los componentes de la inmunidad mediada
por células que participan en la protección y la actividad viral,
en humanos y animales, son: células natural killer (NK), linfocitos T
citotóxicos (LTCs), las citocinas y otros productos químicos 128.
Los LTC específicos ejercen su actividad antiviral a través de
la lisis directa, la inducción de apoptosis y la producción de
citocinas. Las células NK destruyen la célula infectada y las
citocinas tienen funciones críticas en la regulación de la respuesta
inmune, y actúan por actividad citotóxica y por mecanismos no
citopáticos que eliminan al virus sin destruir la célula infectada.
La inmunidad
mediada por células LTC ha sido primordialmente estudiada en modelos
animales infectados con rotavirus 80,129 y se conoce poco de ella
en humanos. Hasta el momento, se sabe que la inmunidad mediada por células
tiene más que ver con la recuperación de la enfermedad que con
la prevención. En la infección por rotavirus, la participación
de las CTCs, particularmente las CD8 ha sido demostrada 80,127,129,
pero también se ha planteado la participación de las CD4 127.
Las citocinas, células NK y otros productos inmunológicos también
juegan un papel en la resolución de la enfermedad. Se ha demostrado el
papel protector de las células LTC en ausencia de IgA en la clínica
de ratones con infección natural 130, y en ratones vacunados
41,131. También por otro lado, se ha mostrado la presencia
de citocinas, en mayor cantidad en la inmunización cuando se compara
con la infección natural, lo que podría explicar el efecto protector
de la citocinas o células NK en niños vacunados, en las cuales
no se ha demostrado efecto protector mediado por anticuerpos 41.
Igualmente,
la modificación del curso de la enfermedad depende de la diferenciación
de las células B de memoria en células B secretoras de anticuerpos
81, lo que se explica, entre otras razones, por el corto período
de incubación que tiene el rotavirus 80.En ratones, las células
de memoria B, o la primera línea de defensa en la re-infección,
y las LTC, que median, acortando el proceso de la infección, aparecen
3-4 días después de la infección y posiblemente sean las
células primarias efectoras las que participan en los mecanismos de defensa
81. En resumen, las células B y T participan eliminando la
viremia en la infección primaria y protegen contra re-infecciones, y
las células T, particularmente las CD8, parecen acelerar la eliminación
del virus; mientras que los anticuerpos median la protección contra la
re-infección y también ayudan a la resolución de la enfermedad
127,129.
Recientemente,
el Dr. Franco y colaboradores caracterizaron las células T en humanos
85,132,133. Ellos demostraron la presencia de células T rotavirus
específicas productoras de interferón gamma, en adultos y niños
infectados con rotavirus. Estas células son en su mayoría del
tipo CD8+ y expresan el receptor integrina, lo que indica su origen intestinal
132,133. Pero esta respuesta es menor que la inducida por los virus
sistémicos, como el citomegalovirus 85. También pareciera
que el interferón no juega un papel en la infección por rotavirus
81. Sin embargo, se necesitan futuros estudios para clarificar mejor el
papel inmune de las células B y T en la infección por rotavirus
inducida por virus salvaje o por vacuna.
Por último,
los hallazgos recientes sobre el papel patogénico e inmunológico
de la proteína NSP4 y el mecanismo de protección viral asociado
a la proteína VP6 abren nuevos caminos en la investigación sobre
la inducción de inmunidad mediada por anticuerpos o por células
en la infección por rotavirus. Recientemente, se encontró que
la proteína no estructural NSP4 tiene la capacidad de producir diarrea
- actúa como una enterotoxina y produce diarrea en ratones- y de inducir
anticuerpos protectores en ratones 57. Estas investigaciones mostraron
que la proteína NSP4 induce una respuesta humoral y es capaz de producir
una respuesta celular que posiblemente involucre células T citolítica
101. Por otro lado, también se demostró que la proteína
VP6, localizada en la capa media del virus, es capaz de inducir inmunidad protectora
en ratones -anticuerpos no neutralizantes IgA anti-VP6- y de modificar la infección
en ratones inmunodeficientes por inactivación del virus durante la transcitocis
en el medio intracelular 102. Este mecanismo intracelular de neutralización
viral podría explicar la protección heterotípica en la
infección natural y durante la inmunización activa con vacunas
observada en algunos estudios 134. Estos hechos presentan nuevos
caminos para el entendimiento de la inmunidad del rotavirus y añaden
otras posibilidades para el desarrollo de vacunas que, además, en el
caso de la proteína VP6, tendría la ventaja de ser común
a los rotavirus del grupo A. |